Фотохимический этап. Электронно-транспортная цепь фотосинтеза. Представления
о функционировании двух фотосистем. Фотофосфорилирование. Системы фотоокисления
воды и выделения кислорода при фотосинтезСтраница 3

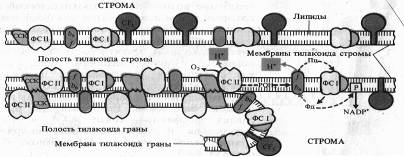
Белковые комплексы, участвующие в фотохимических реакциях фотосинтеза, в мембранах хлоропластов распределены неравномерно. Наибольшие различия наблюдаются между теми мембранами, которые плотно состыкованы друг с другом в гранах и теми участками мембран, которые контактируют со стромой (закругленные участки тилакоидов гран и мембраны тилакоидов стромы).
Светособирающий комплекс и пигмент-белковый комплекс ФС II находятся в основном в мембранах, плотно контактирующих друг с другом, причем ССК играет особую роль. В адгезии тилакоидных мембран.
Показано, что у мутанта хламидомонады, лишенного белка, с которым связан хлорофилл Ь,
граны не образуются. ФС I со своим светособирающим комплексом преимущественно, а АТФазный комплекс (CF1 + CF0), как правило, находятся на несостыкованных участках мембран. Комплекс цитохромов b6 — f равномерно распределен как в состыкованных, так и в не состыкованных мембранах. Такое распределение белковых комплексов, участвующих в световой фазе фотосинтеза, ставит вопрос о способе их взаимодействия. Показано, что это взаимодействие осуществляется с помощью легкоподвижного липофильного пластохинона PQ
в липидной фазе и благодаря перемещению водорастворимого пластоцианина вдоль внутренних поверхностей ламелл и водорастворимого ферредоксина вдоль их
наружных поверхностей.
К латеральным перемещениям вдоль мембраны способны и сами белковые комплексы. На это передвижение влияет величина их электрического заряда. Например, восстановление пластохинона PQ
фотосистемой II приводит к активации киназы и фосфорилированию ССКа-ь.
Фосфорилирование ССК увеличивает его отрицательный заряд, что способствует перемещению ССК в стромальную область мембраны и возрастанию миграции поглощенной энергии света к ФС I. Возросшая фотохимическая активность ФС I усиливает окисление PQ,
что, в свою очередь, приводит к инактивации киназы, фосфатаза же дефосфорилирует ССК. Таким образом, обратимое фосфорилирование ССК представляет собой петлю обратной связи в системе взаимной регуляции активности ФС I и ФС II. Механизм такой регуляции включает латеральный транспорт белковых комплексов в мембранах хлоропластов.
Похожие материалы:
Состав мембран
Основными компонентами мембран являются белки и липиды. На долю углеводов может приходиться около 10% массы мембран, при этом они всегда входят в состав гликолипидов или гликопротеи-нов. Соотношение между белками и липидами в мембранах зн ...
Подтипы клеток и функция
Существует несколько отчетливых типов ганглиозных, горизонтальных, биполярных и амакриновых клеток, каждый из которых обладает характерной морфологией, специфичностью медиатора и физиологическими свойствами. Например, фоторецепторы раздел ...
Рельеф и почвы
В восточной части территории местность равнинная, открытая, заболоченная, труднопроходимая вне дорог для всех видов транспорта. Поверхность равнины плоская или слабо волнистая, пересеченная многочисленными речными долинами с плоским забол ...